Nature | Baker团队通过计算设计构建金属蛋白酶
摘要
DRUGONE从头设计能够高效催化酰胺键水解的人工酶,一直是计算蛋白质设计领域的重要挑战。与相对容易水解的酯键不同,肽键具有较高的化学稳定性,其有效断裂不仅需要精确的催化活性位点,还需要对底物进行特异
正文
DRUGONE
从头设计能够高效催化酰胺键水解的人工酶,一直是计算蛋白质设计领域的重要挑战。与相对容易水解的酯键不同,肽键具有较高的化学稳定性,其有效断裂不仅需要精确的催化活性位点,还需要对底物进行特异性识别与定位。
研究人员利用RFdiffusion系列生成模型,从头设计具有锌离子配位中心、水分子活化位点和多肽底物结合口袋的金属蛋白酶。在135个实验测试设计中,36%的蛋白质能够在预期位置切割相应的多肽底物。活性最高的初始设计相较于非催化肽键水解实现了超过10⁸倍的反应加速,而通过引入四个氨基酸替换,催化加速倍数进一步提高至10¹⁰倍以上。
基于这一设计策略,研究人员进一步构建了能够选择性切割TDP-43、淀粉样蛋白β(Aβ)和血清淀粉样蛋白A(SAA)相关序列的人工金属蛋白酶,部分反应实现了高达10⁹倍的速率提升。此外,研究人员利用设计蛋白酶作为特异性激活开关,实现了人工细胞因子和受体拮抗剂的条件性激活。该研究证明,生成式蛋白质设计能够直接构建具有显著催化活性和可编程底物选择性的人工蛋白酶,为精准生物治疗、合成生物学和生物技术提供新的工具。
蛋白酶通过催化肽键水解参与细胞信号传导、组织重塑、蛋白质降解及代谢调控等重要生物学过程。其中,金属蛋白酶通常利用金属离子作为催化辅因子,活化水分子并促进肽键断裂,在生命体系中发挥广泛作用。然而,从头设计能够切割天然肽键的人工酶极具挑战性。首先,酰胺键由于共振稳定作用具有较高的化学稳定性,在生理条件下自发水解极其缓慢。其次,高效催化需要精确定位金属配位残基、广义酸碱催化基团和过渡态稳定基团,并使底物中的目标肽键以合适的空间构象进入活性中心。
此前,计算设计金属水解酶的研究主要集中于具有活化离去基团的小分子酯底物,而对于稳定肽键的高效水解,仍缺乏成熟的从头设计方法。传统蛋白质工程通常通过改造天然蛋白酶获得新的催化特性,但其功能空间受到天然蛋白质骨架和进化历史的限制。
近年来,RFdiffusion等生成式蛋白质设计方法显著提升了人工蛋白质结构生成的能力。尤其是能够直接根据催化官能团空间位置生成蛋白质骨架的RFD2,以及面向分子界面设计的RFD2-MI,为同时构建催化中心与底物识别界面提供了新的可能。研究人员因此提出,能否利用生成模型围绕理想化锌催化中心直接生成全新的蛋白质骨架,并同时优化酶与底物的相互作用,使人工蛋白质具备真正的肽键水解功能。
方法
研究人员首先参考天然锌金属蛋白酶氨肽酶N的晶体结构,提取由两个组氨酸、一个谷氨酸、催化性谷氨酸及酪氨酸组成的理想化活性中心,并根据天然蛋白酶astacin的酶–底物结合模式构建目标肽键与催化中心的空间关系。随后使用RFD2-MI生成长度为160–190个氨基酸的人工蛋白酶骨架,并同时生成与其结合的8–13个氨基酸多肽底物。利用EnhancedMPNN联合优化酶和底物序列,再通过AlphaFold 3预测游离酶、酶–底物复合物及过渡态类似物复合物的结构,筛选具有合理折叠、底物定位和催化几何构型的设计。研究人员比较了仅考虑锌离子与同时显式考虑锌配位水分子的两种建模策略,通过融合蛋白的顺式切割和独立底物的反式切割实验验证活性,并结合质谱、动力学分析、定点突变、X射线晶体学、机器学习力场与分子动力学模拟解析催化机制。进一步利用原子级RFdiffusion3设计能够切割疾病相关蛋白的金属蛋白酶,并构建可通过特异性肽链切割激活的细胞因子和受体拮抗剂,验证其在细胞信号调控中的应用潜力。
结果
基于生成模型构建具有完整催化中心的人工金属蛋白酶
研究人员首先建立了一种同时考虑催化反应机制与底物识别的计算设计策略。天然锌金属蛋白酶通过两个组氨酸和一个谷氨酸配位Zn(II),并利用另一谷氨酸活化配位水分子,使其攻击肽键羰基碳,形成四面体中间体。附近的酪氨酸通过氢键稳定高能氧阴离子,从而促进肽键断裂。
基于这一机制,研究人员提取了包含五个关键催化官能团的理想化活性位点,并引入能够通过β链氢键配对结合底物的结构约束。随后使用RFD2-MI在活性位点周围生成新的蛋白质骨架,使催化中心和多肽结合口袋能够在同一结构中形成。
与传统仅设计蛋白酶序列的方法不同,研究人员采用双向序列设计策略,同时优化蛋白酶与底物序列,以保证目标肽键能够准确定位于锌催化中心附近。之后利用AlphaFold 3对不同状态的结构进行评估,并通过迭代生成进一步改善活性位点几何构型和蛋白质–底物界面质量。
值得注意的是,研究人员发现,是否在结构预测中显式考虑参与催化的水分子,对设计成功率具有重要影响。因此,研究分别采用仅包含Zn(II)以及同时包含Zn(II)和配位水分子的建模方案,最终筛选135个设计进入实验验证。
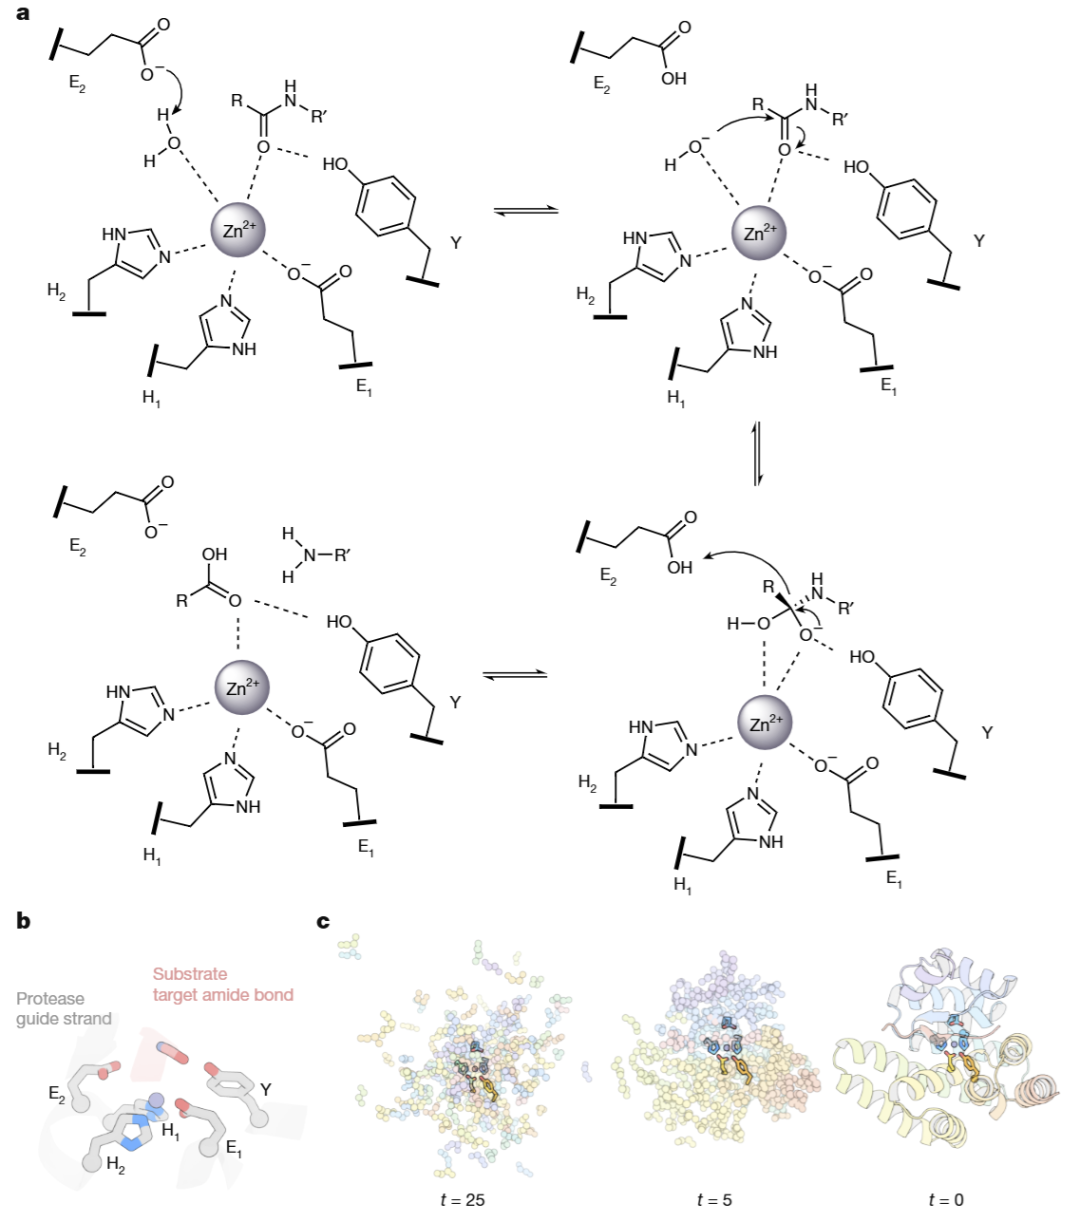
图1|基于锌离子催化机制和RFdiffusion的人工金属蛋白酶计算设计策略。
显式建模催化水分子显著提高蛋白酶设计成功率
为了快速检测设计蛋白酶是否具有催化活性,研究人员首先构建顺式切割体系,将人工蛋白酶与对应底物肽链连接,并通过mScarlet荧光蛋白标签检测切割后的分子量变化。
实验结果显示,135个设计中有131个能够可溶性表达,其中127个具有预期分子量。以37 °C反应12小时后底物切割比例超过10%作为成功标准,全部设计的总体成功率达到36%。
两种建模策略之间存在显著差异。对于仅考虑Zn(II)的设计,89个可检测样品中只有14个在12小时内达到成功标准;而显式包含配位水分子的38个设计中,有35个达到相同标准,成功率分别约为15%和88%。进一步的结构比较解释了这种差异。仅考虑锌离子时,部分无活性设计的底物仍被预测为正确结合。然而,当加入催化水分子后,这些设计中的水分子与底物发生空间冲突,使目标肽键无法正确进入催化位置。相反,活性设计能够同时容纳底物和催化水分子,并形成适合亲核攻击的几何关系。
研究人员还利用独立表达的蛋白酶与底物进行反式切割验证。在22个候选设计中,有14个表现出明显活性,代表五种不同蛋白质骨架。顺式与反式实验的切割活性高度相关,Pearson相关系数达到0.91。这些结果说明,准确描述催化过程中不可缺少的水分子,是提高金属蛋白酶从头设计成功率的关键。
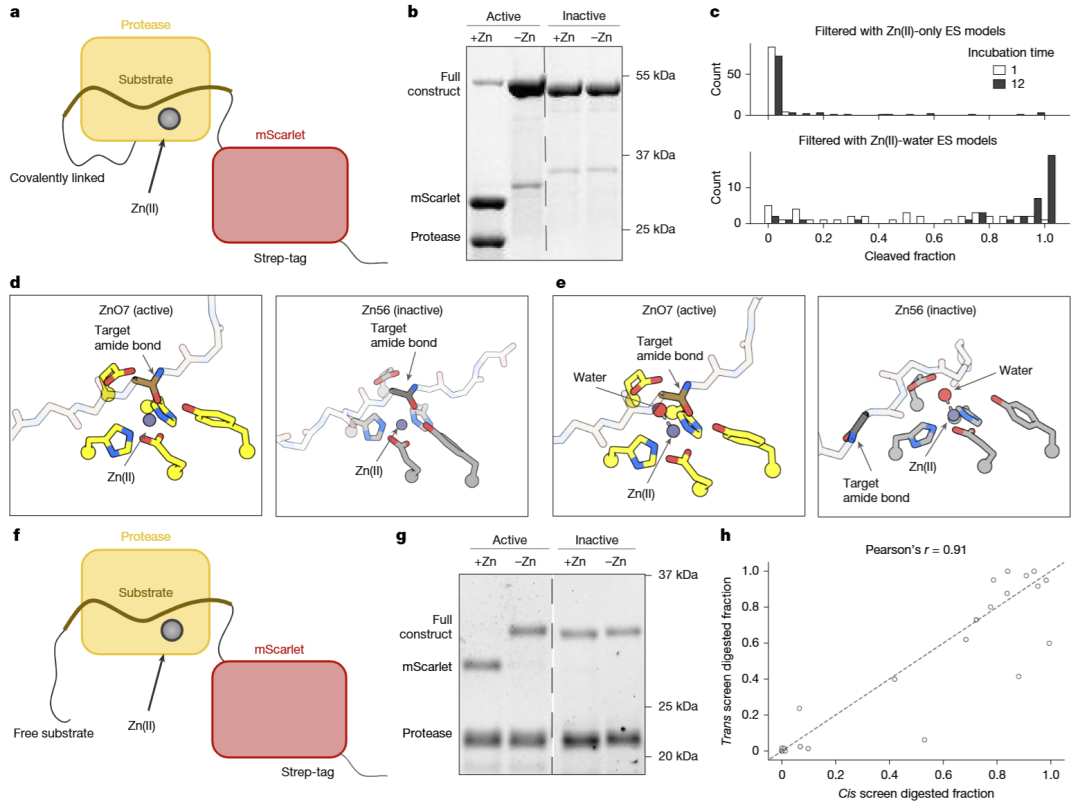
图2|人工金属蛋白酶的顺式与反式切割筛选及催化水分子对设计成功率的影响。
人工金属蛋白酶表现出可验证的催化机制与底物选择性
在获得具有切割活性的蛋白酶后,研究人员从五种不同骨架中选择代表性设计,进一步验证其催化机制和底物识别能力。通过对锌配位组氨酸、谷氨酸及催化性谷氨酸进行定点突变,研究发现,破坏任意关键锌配位残基或催化碱均使酶活性降低至少7倍。将负责稳定氧阴离子的酪氨酸替换为苯丙氨酸,也在多数设计中造成明显活性下降,证明催化功能确实依赖预设的活性位点。
锌结合实验进一步显示,这些人工蛋白酶对Zn(II)具有较高亲和力,解离常数处于10⁻¹⁰至10⁻⁸ M范围,部分设计甚至接近天然锌酶的金属结合能力。在底物选择性方面,五个代表性设计中有四个优先切割各自设计的底物,说明双向序列设计能够产生一定的底物特异性。然而,Zn45表现出较广泛的交叉反应活性,能够有效切割多个其他设计对应的底物。
研究人员进一步测定了ZnO7和Zn45的稳态动力学参数。ZnO7对其对应底物的催化周转数为0.0010 s⁻¹,而Zn45切割ZnO36底物时达到0.025 s⁻¹,对应的催化效率约为900 M⁻¹ s⁻¹。与非催化肽键水解相比,Zn45实现了超过10⁸倍的反应加速。这些实验表明,生成模型设计的蛋白质不仅能够结合金属离子和多肽底物,还能够形成真实有效的催化中心,并实现一定程度的底物选择性。
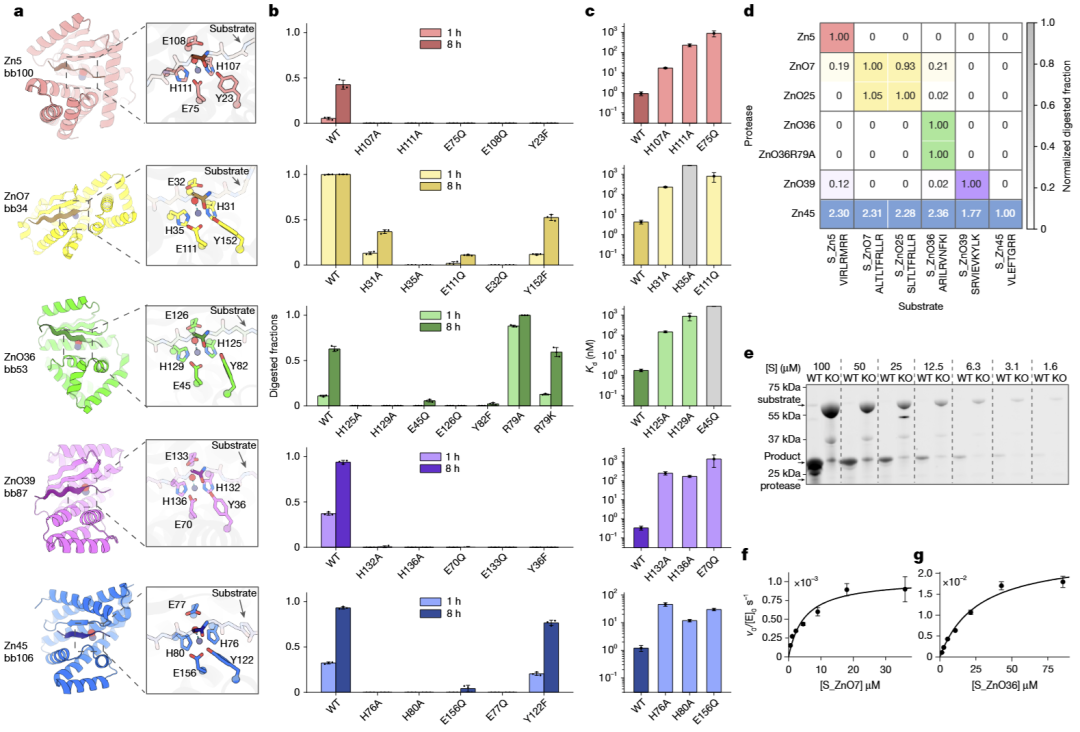
图3|从头设计金属蛋白酶的活性位点验证、金属结合能力、底物选择性及催化动力学。
结构解析与活性位点优化使催化效率提高至10¹⁰倍以上
为了研究人工蛋白酶的结构准确性,研究人员解析了Zn5和ZnO7的X射线晶体结构。实验结构与计算设计模型高度一致,主链Cα均方根偏差分别为0.82 Å和1.35 Å,表明生成模型能够较精确地构建全新的金属蛋白酶骨架。在ZnO7–底物复合物的晶体结构中,研究人员直接观察到位于设计位置的Zn(II)、配位水分子及通过β链配对结合的底物肽链,进一步证实了计算设计的催化中心和底物识别模式。
然而,尽管设计结构与实验结构高度吻合,人工蛋白酶的催化活性仍低于部分天然金属蛋白酶。研究人员通过机器学习力场计算和分子动力学模拟发现,催化残基的局部构象波动以及底物亲核攻击几何构型不足,可能限制了反应效率。
为进一步优化Zn45,研究人员对催化中心附近的21个氨基酸位置开展系统突变分析,并最终组合F48W、Y152I、A79Q和Y83Q四个有利突变,获得优化变体Zn45_v2。
该变体的催化周转数提高至0.75 s⁻¹,催化效率达到约31,000 M⁻¹ s⁻¹,均较原始Zn45提高约30倍。相较于非催化肽键水解,Zn45_v2实现了1.4×10¹⁰倍的反应加速,每个活性位点能够完成超过3,500次催化循环。分子动力学模拟表明,优化突变改善了催化性谷氨酸与水分子的空间关系,并使亲核攻击角度更加接近天然金属蛋白酶的反应构型。这说明进一步提高人工酶催化能力的关键,不仅在于准确生成蛋白质静态结构,更在于预组织催化基团和底物的动态构象。
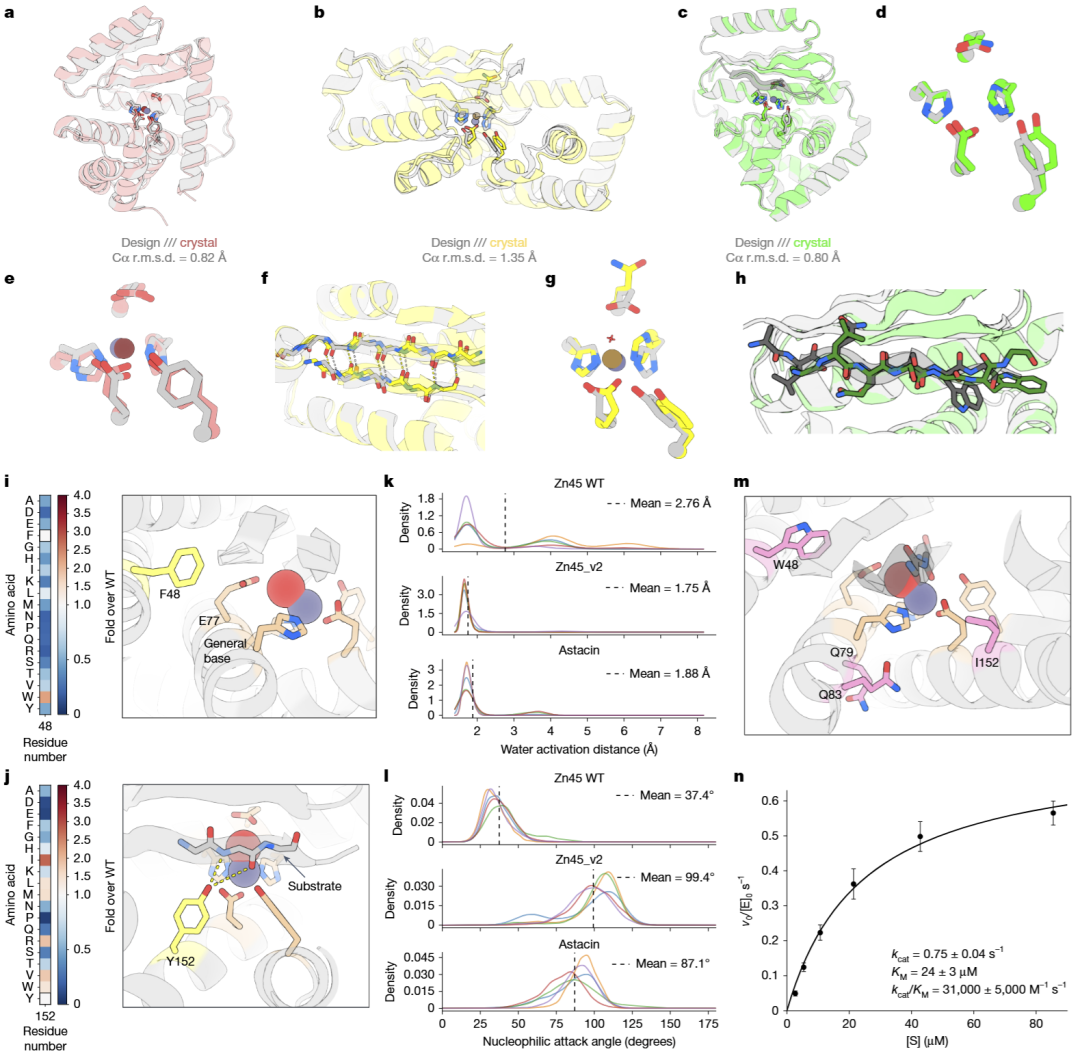
图4|人工金属蛋白酶的晶体结构验证、催化位点预组织及突变优化。
可编程金属蛋白酶实现疾病相关蛋白切割与治疗分子的条件性激活
在验证人工金属蛋白酶的催化能力后,研究人员进一步探索其对疾病相关蛋白的选择性切割。研究选择与蛋白质异常聚集有关的TDP-43、淀粉样蛋白β及血清淀粉样蛋白A作为设计目标。
对于TDP-43,研究人员首先尝试改造已有人工蛋白酶的底物识别界面,但所得设计仍保留对原始底物的明显偏好。随后,研究人员利用原子级RFdiffusion3直接围绕TDP-43目标多肽序列重新生成蛋白酶骨架,并构建相应催化中心和底物结合界面。
获得的代表性设计TDPn3能够优先切割TDP-43目标序列,其催化周转数达到0.033 s⁻¹,催化效率约为640 M⁻¹ s⁻¹。进一步在体外实验中,TDPn3能够切割全长TDP-43的单体和寡聚体,并产生预期大小的蛋白片段。研究人员还成功设计了能够优先切割Aβ和SAA来源多肽的金属蛋白酶,说明该方法能够适应不同的疾病相关底物序列。
除直接切割蛋白质外,研究人员还探索了人工蛋白酶作为生物分子激活开关的应用。研究将人工白细胞介素-2模拟物Neo2与遮蔽其受体结合界面的微型结合蛋白连接,并在连接区域引入人工金属蛋白酶识别序列。在未切割状态下,遮蔽结构降低了Neo2的受体激活能力;加入Zn45或Zn45_v2后,连接肽被切割,Neo2恢复活性,形成约50倍的条件性激活窗口。相比之下,天然基质金属蛋白酶MMP2未能有效激活该体系。
研究人员还利用类似策略构建了遮蔽型表皮生长因子受体(EGFR)拮抗剂。人工蛋白酶能够通过切割连接肽释放拮抗剂,从而抑制EGFR及下游ERK磷酸化信号,而催化失活变体无法产生相同效果。这些结果证明,人工金属蛋白酶不仅能够针对特定疾病相关序列进行切割,还可以作为正交分子开关,对细胞信号通路进行选择性调控。
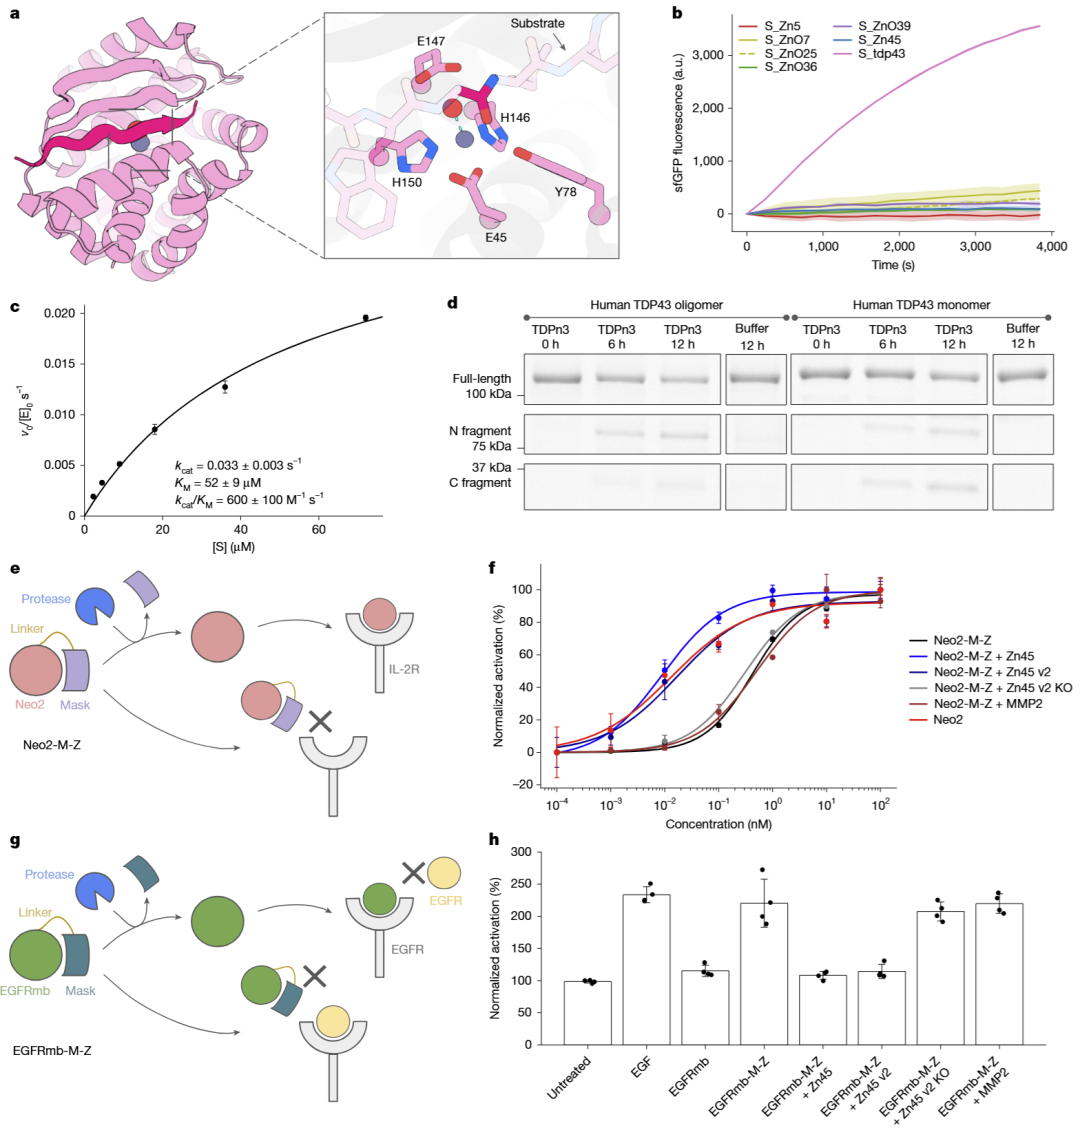
图5|可编程金属蛋白酶对疾病相关蛋白的选择性切割及治疗性生物分子的条件性激活。
讨论
本研究标志着从头酶设计从相对简单的小分子水解反应进一步拓展至具有高度化学稳定性的天然肽键水解。研究人员通过将生成式蛋白质骨架设计、催化官能团几何约束与底物界面设计相结合,成功构建了具有显著活性的人工金属蛋白酶。
该研究最重要的发现之一是,显式考虑催化水分子能够显著提高人工酶设计的成功率。这表明,对于涉及多步化学反应的酶设计,仅保证催化残基的静态空间排列仍然不足,还需要准确描述直接参与反应的分子及其几何关系。另一个重要发现是,蛋白质结构预测精度与催化效率并不完全等价。尽管部分人工酶的晶体结构与计算模型达到接近原子级的一致性,其催化效率仍受到活性位点动态波动和过渡态稳定能力的限制。通过少量突变改善催化位点预组织,便能够显著提高酶活性,说明未来的计算酶设计需要进一步结合反应能量景观、分子动力学和催化过程建模。
此外,该研究展示了从头设计蛋白酶在疾病相关蛋白切割及生物治疗调控中的潜力。不过,目前针对疾病蛋白的切割主要在体外得到验证,治疗分子的条件性激活也主要处于细胞实验阶段,尚需系统评价其在复杂生理环境中的稳定性、选择性、安全性及体内治疗效果。
总体而言,David Baker团队证明,生成式蛋白质设计能够从头构建具有高催化活性、可编程底物识别能力的人工金属蛋白酶,并进一步用于疾病相关蛋白切割与细胞信号调控。这为人工酶设计从结构生成走向催化功能设计及潜在治疗应用提供了重要基础。
整理 | DrugOne团队
参考资料
Chen, A., Wu, K., Choi, H. et al. Computational design of metalloproteases. Nature (2026).
https://doi.org/10.1038/s41586-026-11167-2
内容为【DrugOne】公众号原创|转载请注明来源