一文读懂:ADC的耐药机制
摘要
2026年7月29日,生物药笔记发布文章,系统梳理抗体药物偶联物(ADC)的耐药机制,涵盖靶点下调、内吞障碍、溶酶体降解异常、药物外排及肿瘤微环境等因素,并探讨联合用药策略及新一代ADC设计方向。
AI 主编 · 推荐理由推荐理由
ADC研发热点,耐药机制是临床失败主因。建议研发与临床团队参考,优化分子设计及联合方案,提升成功率。
五维评分
正文
我们有之前的文章《一文读懂:抗体偶联药物(ADCs)》详细介绍了ADC。近几十年来,各种化疗药物在抗肿瘤方面已经得到了大量的验证,但是由于高耐药率和严重的不良反应限制了其广泛应用。为了提高化疗效果、减轻获得性耐药并降低全身毒性而出现的一种新的治疗方法即抗体偶联药物(ADC)。对于ADC的了解,可以参考公众号的系列文章,本文就不再赘述。
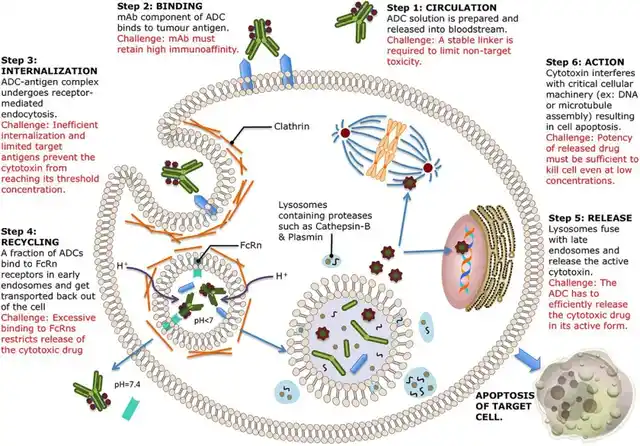
ADC药理学上的精准性来自于它特有的结构,该结构决定了其在体内起作用的机制:抗体组分能识别靶细胞表面的特异性抗原,再通过内吞作用介导药物内化,溶酶体酸性微环境中,由于降解作用的发生使ADC水解、蛋白水解酶使得抗肿瘤载荷与抗体之间的连结被断开,然后释放出的细胞毒性物质进入细胞质中,通过干扰细胞周期进程等方式并引起凋亡。ADC完整的发挥作用的途径图见下图所示。也可见《一图了解:抗体偶联药物(ADC)的作用机制》。
随着临床使用范围的扩大,ADC耐药问题也越来越严重,已经成为临床治疗面临的重要难题。目前关于ADC获得性耐药的报道越来越多,说明系统地研究其潜在机制,解决相关的临床问题迫在眉睫。本文就ADC耐药的潜在机制进行了综述。
ADC的耐药机制
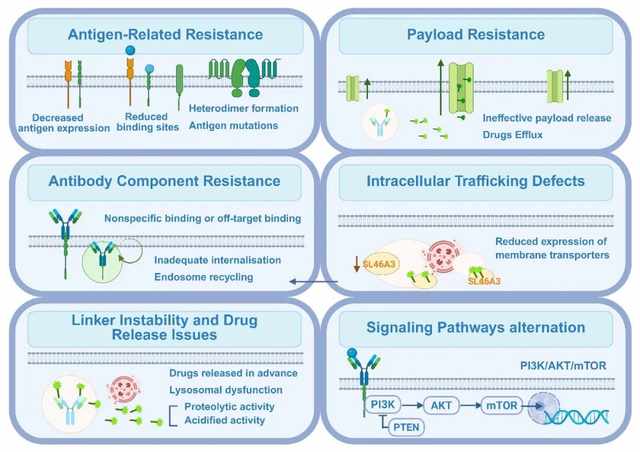
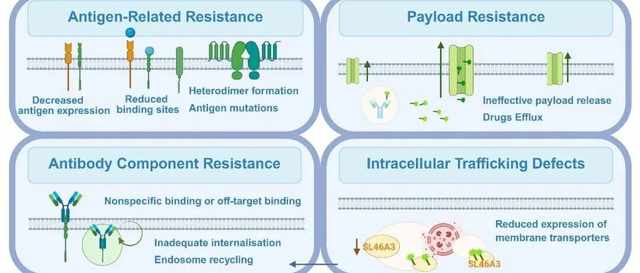
ADC药物主要耐药机制:包括抗原相关耐药、有效载荷耐药、抗体组分耐药、胞内运输缺陷、连接子不稳定和药物释放问题、信号通路改变。
一、抗原相关的耐药
抗原表达的下调或者丢失:在HER2(T-DM1)、BCMA(贝兰他单抗莫福汀)、TROP-2、Nectin-4(恩诺单抗维多汀)靶向的ADC中,都存在抗原下调的报道,同时相应的治疗效果减弱,产生耐药。 内吞途径与替代机制:小窝蛋白1(CAV-1)是参与ADC内吞的途径之一。其过表达与HER2表达呈负相关,同时减少溶酶体的共定位,导致对T-DM1的敏感性降低。而德曲妥珠单抗(T-DXd)不受HER2结合或者ADC内吞的影响,其抗肿瘤活性是由肿瘤微环境中胞外蛋白酶介导的(CTSL),对HER2低表达或HER2阴性的肿瘤产生细胞毒性作用。 抗原异质性:抗原表达的肿瘤异质性对ADC疗效有明显的影响,在T-DM1和帕妥珠单抗治疗HER2异质性的研究中没有一个达到主要终点,病理完全缓解率是0%。HER2未扩增细胞所占的比例会致使细胞产生耐药性,靶抗原截短型胞外域的积累也与肿瘤对治疗的耐药性增强有关。 旁观者效应和物理屏障:含有不可裂解连接子的ADC中,由于膜通透性受到限制,旁观者效应一般会减弱,从而同时降低治疗效果。一些肿瘤细胞可以改变其细胞膜上的抗原或者分泌出黏蛋白、透明质酸等物理屏障来阻挡抗体与之结合,抗原还可以同其他蛋白质形成复合物进而促成耐药。而HER2/HER3异源二聚体的形成与曲妥珠单抗耐药有关,HER3过表达和ADC耐药有关。
二、抗体组分相关的耐药
抗体同靶抗原之间是相互依赖的关系,抗原的表达水平、内在异质性、抗原脱落、表位突变或者靶抗原的其他结构改变等都会影响有效的抗体和抗原之间的结合,因此就会破坏ADC所依靠的抗原介导的内吞途径。此外非特异性结合或异常的胞内运输会把抗体-抗原复合物错误地引导到非溶酶体区室或再循环通路中,从而妨碍有效载荷的有效释放。可参考《一文读懂nature综述:新生儿Fc受体(FcRn)》。
另外,肿瘤微环境向免疫抑制状态的转变会进一步加重耐药。对可结晶片段(Fc)区进行工程改造以减少Fcγ受体(FcγR)结合,也会损害Fc结构域的免疫原性完整性,从而降低补体成分1q(C1q)的结合,并减弱抗体依赖的细胞毒作用(ADCC)和补体依赖的细胞毒作用(CDC)等重要的效应机制。可参考《一图读懂:六种人类Fcγ受体(FcγRs)的功能、IgG亲和力及表达》。
三、连接子不稳定与药物释放问题
连接子是影响ADC性能的重要因素,因为它决定了有效载荷的释放时间、位置。当ADC和抗原结合并内吞之后,高效溶酶体加工使得蛋白水解酶能够降解偶联物并切断连接子,从而释放出活性细胞毒性药物,一些连接子不稳定会导致有效载荷在ADC到达溶酶体之前过早释放出来。脱靶释放会减少靶向效应、增加全身毒性,并且因为健康组织暴露或者对肿瘤细胞亚致死剂量给药而导致耐药,因此选择同时具有最好稳定性和溶酶体可切割性的连接子对于平衡疗效与安全性就显得尤为重要。
细胞表面靶标识别完成后,ADC-抗原复合物通过受体介导的内吞作用进入细胞,依次经过早期内体、晚期内体,最后与溶酶体融合实现有效载荷释放,在酸性、含大量蛋白酶的溶酶体里,抗体被分解,连接子被切开,游离的活性有效载荷发挥细胞毒性作用。此通路可因遗传或分子上的改变而中断,如HER家族受体动力学改变的突变、热休克蛋白90(HSP90)抑制(会破坏受体构象和内吞路由),从而降低溶酶体递送及有效载荷释放。
因此,稳健的连接子设计以及完整的内吞-溶酶体运输功能是保证ADC活性互相依赖的前提条件:前者保证有效载荷在预期细胞内区室准确释放,后者保证ADC到达该处,任何一个过程出现缺陷都会降低靶向疗效并且促进治疗耐药的发展。
四、有效载荷耐药
外排泵的过表达是另一种重要的耐药机制,即有效载荷在发挥细胞毒性作用之前就被排出到肿瘤细胞之外。三磷酸腺苷(ATP)结合盒(ABC)转运蛋白活性增加可导致如MMAE等细胞毒性药物被排出体外,而MMAE是ABC转运蛋白底物的一种。许多ADC有效载荷被认为是这些转运蛋白的底物,其在肿瘤细胞中上调后可以主动驱动药物外排,降低疗效并促进耐药。包括DM1、DM4、MMAE、MMAF以及某些TOP1抑制剂(如DXd)、SN-38等具有不同对主动外排易感性特征,致使胞内累积量下降及细胞毒效应减低。
完整的ADC与未偶联药物在外排易感性上是有差异的:大分子偶联物本身不是外排底物,只有当溶酶体加工释放出膜渗透性代谢物之后,这些代谢物才能被ABC转运蛋白有效地排出,所以连接子化学性质、有效载荷疏水性、释放动力学决定了外排活性最终会怎样影响ADC效力的关键因素。
药物靶点的改变造成耐药.在T-DM1暴露之后,已观察到有效载荷靶点TOP1被修饰。TOP1的点突变使该酶对DNA的亲和力降低,从而削弱了有效载荷与酶-DNA复合物之间的相互作用。同样地,影响微管蛋白(即微管破坏有效载荷的靶点)的突变也会对ADC疗效造成损害。另外由于ADC有效载荷本质是化疗药物,会继承常规化疗的一些固有耐药机制。
药物与抗体的比值(DAR)也是影响ADC性能的一个重要因素,位点特异性半胱氨酸偶联的ADC表现出较好的耐受性以及更强的治疗效果。最佳DAR还未确定,因为较高的DAR一般会导致清除加快,从而降低疗效,目前的研究重点是在偶联位点、偶联方法和载药量之间找到最适宜的比例关系。
五、胞内运输缺陷
胞内运输缺陷主要有:
内体再循环:药物内吞的过程中,有些内体会发生再循环,从而使得ADC离开溶酶体路径,造成有效载荷无法释放。在有效载荷释放之前,这些再循环的内体会返回到细胞膜上,导致ADC过早地被清除出细胞内区室。
溶酶体膜转运:含有不可裂解的连接子的ADC,其代谢物要经过溶酶体膜转运到细胞质中。转运蛋白SLC46A3可以把活性成分从溶酶体里转移出来进入细胞质中。转运蛋白的表达减少可以削弱ADC的作用并且促进耐药的发生。
体循环和组织分布:因为单克隆抗体分子量大,所以它穿透血脑屏障(BBB)的能力自然受到限制,因此ADC对于局部脑部病灶的控制效果仍然存在争议。T-DXd在HER2阳性和HER2低表达乳腺癌脑转移患者来源的异种移植模型中有中枢神经系统活性证据,初步临床数据在多个机构的脑转移患者中显示有效果。但是接受T-DM1治疗的脑转移患者并没有获得明显的无进展生存期获益,说明了ADC对颅内疾病的疗效还不确定。
溶酶体功能异常:蛋白质水解降解和酸性环境削弱都会阻碍有效的释放有效载荷从而降低细胞毒性活性,溶酶体pH值上升破坏了这个细胞器的降解能力,此现象已经在曲妥珠单抗恩美新耐药细胞中有观察到。由于溶酶体碱化加强、蛋白水解酶活性降低,BT-474乳腺癌细胞渐渐对T-DM1产生耐药性。
六、信号通路改变
细胞信号通路的多种改变对调节ADC功能、导致耐药产生起着非常重要的作用。这些途径控制的是关键的生物过程,即药物反应、胞内运输、细胞增殖、凋亡以及DNA修复。其主要的信号通路变化包括:
PI3K通路激活:其过度激活可能降低ADC的响应性; WNT/β-catenin信号:TROP-2表达变化可以激活促增等信号通路,而Wnt3的过表达会导致β-catenin水平的提升,导致耐药; 生长因子信号:生长因子信号通路的改变还能调节细胞对细胞毒性因子和ADC的敏感性。 ROR1、Hippo/YAP及SRC家族:ROR1的过表达会诱导T-DM1的耐药;Hippo/YAP通路激活增强肿瘤细胞的干性;YES1基因扩增导致Yes激酶过度表达,从而促进对HER2靶向治疗的交叉耐药; DNA修复途径:DNA修复途径在介导HER2靶向ADC的耐药性中也起关键作用。LX4缺失导致T-DXd耐药;PLK1上调与T-DM1耐药相关; 细胞周期和凋亡:抗药性也可以通过细胞周期调控和凋亡信号的改变出现。Cyclin B1在T-DM1敏感细胞中积累,耐药细胞中不积累,可作为疗效标志物。BCL-XL表达与ADC内在敏感性相关;抑制Bcl-2家族蛋白可增强ADC活性。